
年度综述:精氨酸酶和精氨酸在免疫中的作用
本综述发表于2025年《nature reviews immunology》,系统地阐述了 精氨酸酶(ARGs)及其底物L-精氨酸构成的代谢网络,通过动态调控免疫细胞功能,在抗肿瘤免疫、自身免疫平衡及感染防御中发挥中枢作用。ARG1与ARG2作为同工酶,因物种特异性表达模式、亚细胞定位差异及其代谢产物的双向调节特性,成为连接免疫代谢与疾病病理的分子开关。近年研究揭示,ARG1通过耗竭L-精氨酸和生成L-鸟氨酸的双重机制介导免疫抑制,而ARG2则通过线粒体代谢重编程影响T细胞记忆分化。在肿瘤微环境中,精氨酸代谢失衡驱动T细胞耗竭;在自身免疫病中,其功能呈现促炎与抑炎的双重矛盾;在感染性疾病中,ARGs更被病原体劫持以形成免疫逃逸。针对该通路的治疗策略(如精氨酸剥夺疗法、ARG抑制剂开发)已在临床试验中展现潜力,但物种差异和代谢网络的复杂性对转化研究提出重大挑战,亟需深入解析其时空动态与调控机制。
精氨酸酶作为古老且高度保守的锰金属酶,除参与肝脏尿素循环以解毒氨外,其免疫调控功能近年备受关注。哺乳动物中,ARG1(胞质型)与ARG2(线粒体型)虽催化相同的L-精氨酸水解反应,但受差异化的亚细胞定位、调控网络及代谢产物影响,在免疫细胞中呈现时空特异性功能分工。在免疫微环境中,精氨酸代谢的动态平衡至关重要:ARG1通过消耗L-精氨酸抑制T细胞增殖,其产物L-鸟氨酸驱动胶原沉积与组织修复;ARG2则通过线粒体三羧酸循环(TCA)重编程影响T细胞的代谢适应。这种平衡的打破导致疾病特异性免疫紊乱——肿瘤中髓系细胞ARG1的过表达形成免疫抑制生态位,自身免疫病中精氨酸代谢异常加剧TH17与Treg的失衡,而病原体通过劫持ARG通路逃避免疫清除。然而,当前研究仍面临三大瓶颈:人类与啮齿类在ARG区室化(如人类中性粒细胞分泌型ARG1)、储存机制及细胞类型特异性表达上的显著差异;精氨酸代谢网络与多胺、一氧化氮(NO)通路的交叉调控复杂性;以及靶向干预策略的精准性需求(如避免系统性ARG抑制引发的氨代谢紊乱)。解决这些问题需依赖人源化模型、单细胞时空组学技术及亚型特异性调控工具的突破性发展。
1.ARG同工酶、调节机制及分布情况
精氨酸酶(ARGs)在不同物种中具有高度保守的催化活性,除肝脏尿素循环外,广泛表达于免疫细胞,通过催化L-精氨酸转化为L-鸟氨酸驱动脯氨酸(胶原合成关键前体)和多胺(调控增殖、迁移及表观遗传)的生物合成。L-鸟氨酸通过鸟氨酸转氨甲酰酶(OTC)等酶参与瓜氨酸再生(图1),或经鸟氨酸脱羧酶转化为多胺,形成动态代谢网络。免疫细胞主要通过摄取或自噬补充L-精氨酸,而破骨细胞等可通过ASS1/ASL途径回收瓜氨酸生成L-精氨酸;值得注意的是,ARGs与一氧化氮合酶(NOS)竞争底物L-精氨酸,通过降低其可用性、诱导NOS解偶联及抑制酶活性等多机制限制NO生成,但近期研究揭示这种竞争受L-精氨酸供应水平调控——仅在底物受限时显著影响NOS功能。L-精氨酸跨膜转运依赖SLC家族(如SLC7A1)及GPCR6A等蛋白,其胞外池、胞内利用及线粒体转运共同决定代谢平衡。尽管ARG1与ARG2催化相同反应且具代谢补偿能力(如ARG1缺失引发ARG2代偿上调),但两者在亚细胞定位(胞质vs线粒体)、细胞特异性、调控机制及疾病关联中存在显著差异,凸显精氨酸代谢途径的时空复杂性及其在免疫稳态与病理进程中的双重角色。
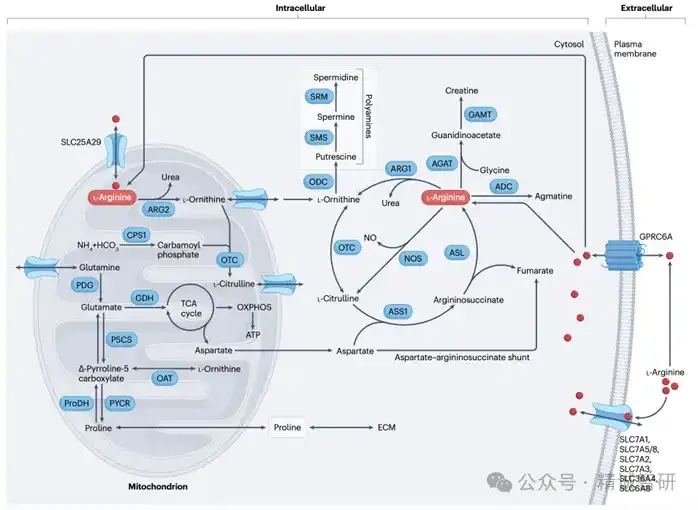
图1连接ARG1、ARG2和L-精氨酸以及与其他代谢途径的生化途径
精氨酸酶1(ARG1)在人类和小鼠中呈现显著物种差异:人类存在三种剪接变体(肝脏表达的异构体1、免疫细胞相关的异构体2及功能未知的异构体3),而小鼠仅表达单一形式,且其免疫细胞(如巨噬细胞、树突状细胞)通过胞内分解L-精氨酸发挥作用,而人类ARG1主要由中性粒细胞分泌至胞外降解底物。ARG1的表达受多层次调控网络支配:IL-4/IL-13通过激活STAT6与C/EBPβ、KLF4协同驱动转录(图2a),STAT6还介导组蛋白H3K4甲基化和JMJD3依赖的H3K27去甲基化以增强启动子可及性;PU.1与IRF8/LXRα复合物结合特定启动子位点强化表达;PPARδ/γ-RXR异二聚体响应脂代谢信号(如修饰LDL)通过PPAR反应元件激活Arg1(图2b),而mTORC1整合TGFβ/IL-4信号正向调节表达,但在营养匮乏时抑制IL-4诱导效应。此外,IL-10/TGFβ通过C/EBPβ异构体、IL-6/TNF通过STAT3间接上调ARG1,肿瘤微环境中乳酸通过稳定HIF-1α促进肿瘤相关巨噬细胞的ARG1表达,形成免疫抑制微环境。ARG1通过消耗L-精氨酸动态平衡免疫代谢,在抗寄生虫反应和组织修复中促进稳态,却在肿瘤及慢性炎症中加剧免疫抑制,其物种特异性机制提示靶向治疗需谨慎评估人类特异性调控通路。
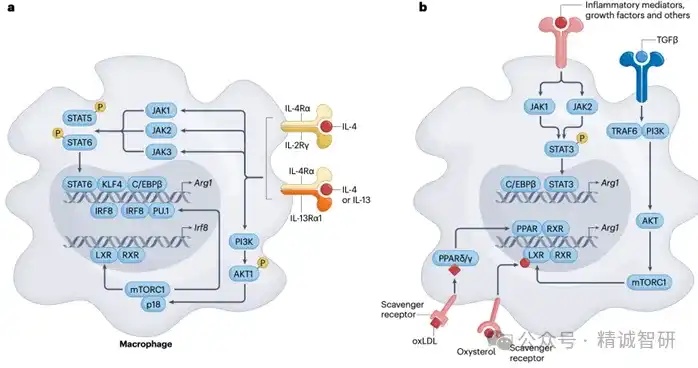
图2在巨噬细胞中有助于 Arg1 转录的信号通路
精氨酸酶2(ARG2)是一种线粒体定位的酶,与ARG1具有58%的序列同源性和相同的催化活性,但其通过调控线粒体代谢网络发挥独特功能。ARG2广泛表达于肾脏、前列腺、脑组织等器官,并利用线粒体SLC25A29转运蛋白调节L-精氨酸池,催化生成的L-鸟氨酸通过上调葡萄糖/谷氨酰胺转运蛋白(如SLC1A5/SLC2A1)促进三羧酸(TCA)循环代谢物(延胡索酸、苹果酸)积累,进而增强电子传递链复合物II活性及氧化磷酸化。在免疫调控中,IL-10可诱导巨噬细胞和树突状细胞(DCs)的ARG2表达,而miR-155通过负向调控其表达维持L-精氨酸稳态;妊娠期胎儿DCs和新生儿红细胞通过ARG2介导的L-精氨酸耗竭促进调节性T细胞(Treg)分化并抑制炎症因子(如TNF)释放,塑造免疫耐受微环境。此外,ARG2在T细胞激活中作为负反馈调节因子限制免疫过度活化,并通过Treg细胞的代谢重编程抑制效应T细胞增殖。综上,ARG2不仅通过直接消耗L-精氨酸抑制免疫反应,其代谢产物更通过重塑线粒体生物能量学参与免疫稳态的全局调控,成为连接代谢与免疫抑制的关键节点。
精氨酸酶(ARG)活性的影响取决于底物(L-精氨酸)的消耗以及产物(例如L-瓜氨酸、L-鸟氨酸和多胺)的生成。由于所有这些分子对其他代谢和信号通路都有重要影响,因此它们在稳态下的水平受到严格调控。在癌症、炎症和自身免疫性疾病期间,可观察到L-精氨酸、L-鸟氨酸和多胺水平的变化。
L-精氨酸是一种半必需氨基酸,是合成L-鸟氨酸、多胺、脯氨酸和一氧化氮等物质的前体(图1)。最近的研究表明,L-精氨酸还在多种细胞过程中发挥着作用,例如DNA复制、表观遗传调控和翻译控制(图3)。这些功能可能对免疫反应以及免疫细胞的适应性和可塑性产生深远影响。在稳态条件下,循环系统中L-精氨酸的主要来源包括食物摄入、由L-瓜氨酸直接合成以及蛋白质分解代谢。
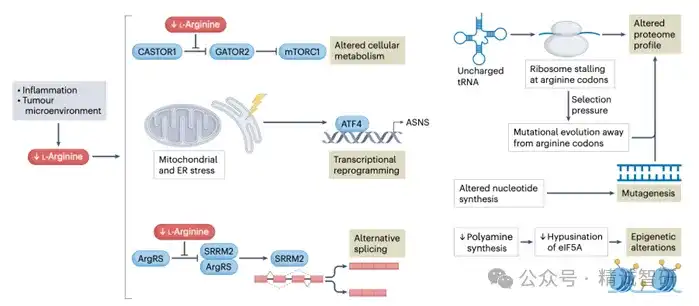
图3 L-精氨酸处于转录、遗传和表观遗传程序的交叉点
L-精氨酸对于包括T细胞活化、早期B细胞成熟和破骨细胞形成在内的多种细胞过程至关重要。L-精氨酸的缺乏会导致细胞周期停滞和T细胞增殖减少,这是由于细胞周期蛋白D3和细胞周期蛋白依赖性激酶4的表达降低所致(图4)。在缺乏L-精氨酸的情况下,T细胞还会下调CD3ζ链,这可能会损害T细胞受体(TCR)信号传导。然而,T细胞在缺乏精氨酸时无法增殖并非仅仅由CD3ζ的低水平表达,因为使用佛波酯(一种绕过TCR的刺激物)也无法恢复T细胞增殖。L-精氨酸缺乏被感知的一种可能机制涉及激酶GCN2。在氨基酸缺乏的情况下,未结合tRNA会积累,从而激活GCN2,使其磷酸化真核起始因子2α。这会导致蛋白质合成的普遍抑制,包括CD3ζ。缺乏GCN2的T细胞在缺乏L-精氨酸的情况下CD3ζ水平正常,并且仍具有增殖能力。另外,GCN2感知到的精氨酸缺乏可能会导致F盒蛋白22(FBXO22)的磷酸化,进而使其在细胞质中积累,并以K27连接的方式使雷帕霉素机制靶点(mTOR)在赖氨酸2066位点失活,从而破坏翻译过程,导致细胞因子生成减少以及CD25和CD69等活化标志物的表达降低(图4)。此外,精氨酸缺乏还会对免疫突触的形成产生不利影响。这与肌动蛋白结合蛋白丝切蛋白(cofilin)的翻译后修饰受损有关,丝切蛋白T细胞受体(TCR)与抗原呈递细胞结合时会被去磷酸化。在丝切蛋白未被去磷酸化的情况下,CD2和CD不会在形成的免疫突触中积累。
图4 ARG1 介导的和 ARG2 介导的免疫调节机制
L-瓜氨酸是一种非蛋白质氨基酸,是合成L-精氨酸的底物。与L-精氨酸不同,L-瓜氨酸在肝脏中不会被大量代谢。在肠道吸收后,它主要绕过肝脏代谢,进入体循环。L-瓜氨酸被肾脏摄取,在那里通过ASS1和ASL酶转化为L-精氨酸。这一过程有效地提高了体循环中L-精氨酸的水平。由于L-精氨酸和L-瓜氨酸在肝脏中的代谢存在差异,补充L-瓜氨酸通常比直接补充L-精氨酸更有效地提高体循环中L-精氨酸的水平,因为L-精氨酸在肝脏中会通过尿素循环被代谢。一些免疫细胞也能在细胞内将L-瓜氨酸转化为L-精氨酸,作为一种补救策略来应对细胞外L-精氨酸含量有限的情况。例如,活化的CD4+T和CD8+细胞持续表达精氨琥珀酸裂解酶(ASL)的T细胞能够上调精氨琥珀酸合成酶1(ASS1)的表达,将L-瓜氨酸转化为L-精氨酸,从而在L-精氨酸缺乏的情况下恢复T细胞的增殖。同样,巨噬细胞以及多核的巨噬细胞衍生细胞(如破骨细胞)能够将L-瓜氨酸再利用,用于内源性L-精氨酸的合成,从而增强一氧化氮(NO)的生成。这种L-瓜氨酸-NO循环对于控制分枝杆菌和单核细胞增生李斯特菌感染至关重要。巨噬细胞持续表达ASL,并且它们能够响应Toll样受体(TLR)激动剂和干扰素-γ(IFNγ)诱导ASS1的表达。ASS1的诱导会导致细胞内L-瓜氨酸的耗竭,在这种情况下,L-瓜氨酸起着先天免疫反应检查点的作用。
L-鸟氨酸是多胺和脯氨酸合成的前体物质,还具有免疫调节特性。例如,L-鸟氨酸能够抑制T细胞的功能。在小鼠的慢性细胞性脉络丛脑膜炎病毒的情况下,一种依赖I型干扰素的反应会重新调整肝脏中尿素循环酶的表达。这会导致循环中的L-精氨酸水平降低,L-鸟氨酸积累,这可能抑制病毒特异性CD8+T细胞反应,并减轻肝脏病理。在最近的一项研究中,合成富含脯氨酸胶原蛋白的巨噬细胞被证明会消耗环境中的L-精氨酸,并分泌L-鸟氨酸,从而损害CD8+T细胞功能。在基因工程小鼠模型中,每日给予L-鸟氨酸会损害对乳腺肿瘤的免疫控制,而给予L-精氨酸则能改善肿瘤生长控制。这些发现表明,精氨酸酶活性通过双重机制抑制T细胞功能:一方面通过消耗半必需氨基酸L-精氨酸,另一方面通过产生免疫抑制产物L-鸟氨酸。然而,在由于葡萄糖缺乏的肿瘤微环境中将氨基酸用作碳源而产生氨的肿瘤中,例如乳腺和结肠,L-鸟氨酸可通过降低氨水平来增强T细胞功能,否则氨会促使T细胞衰竭;实际上,L-鸟氨酸是谷氨酰胺合成的底物,而谷氨酰胺可解毒氨。
多胺(包括腐胺、精胺和亚精胺)作为多功能代谢分子,通过调控细胞增殖、表观遗传、自噬及线粒体功能参与免疫稳态。亚精胺通过上调精氨酸酶1(ARG1)和吲哚胺2,3-双加氧酶1(IDO1)驱动免疫抑制表型:在巨噬细胞中抑制促炎因子(IL-6/IL-17)并促进M2极化(图5),在树突状细胞中通过“ARG1-IDO1接力”耗竭L-色氨酸、生成犬尿氨酸以诱导Treg分化,同时经VISTA介导增强骨髓抑制细胞(MDSCs)的线粒体呼吸与增殖。多胺代谢通过羟基化真核起始因子5A(eIF5A)重塑三羧酸循环和组蛋白修饰(如H3K27乙酰化),影响T细胞发育关键基因(Tbx21/Gata3)的表达。在疾病模型中,多胺呈现双重作用:其促自噬特性支持抗癌T细胞功能,但过度合成可加剧TH17介导的自身免疫病(如EAE),而抑制多胺合成酶(如鸟氨酸脱羧酶)或联合阻断摄取可有效耗竭胞内池,抑制炎症反应。这种代谢可塑性使多胺成为平衡免疫激活与耐受的关键靶标,为癌症免疫逃逸机制解析及自身免疫病治疗提供新策略。
图5 多胺的免疫相关功能
3.免疫细胞中精氨酸酶活性的影响
在人体外的精氨酸酶1(ARG1)存在于多种免疫细胞中,但小鼠和人类在细胞类型分布上存在显著差异。尽管在体外培养的人类和小鼠的M2样巨噬细胞中均能产生ARG1,但目前对于人类巨噬细胞在体内是否表达ARG1仍存在争议,可能其表达具有组织特异性和细胞亚群限制性。相比之下,在小鼠体内已发现多种表达ARG1的巨噬细胞亚群,这些亚群存在于癌症环境中。在人类中,中性粒细胞是ARG1的主要免疫细胞来源,但小鼠的中性粒细胞(除了多形核髓源性抑制细胞(PMN-MDSCs)和肿瘤相关中性粒细胞)在稳态下不表达ARG1。
巨噬细胞的L-精氨酸代谢通过动态平衡促炎(M1)与修复/免疫抑制(M2)表型,塑造其功能多样性:M1型由TH1细胞因子(如IFNγ、IL-1)驱动,通过NF-κB/STAT1信号上调一氧化氮合酶2(NOS2),催化L-精氨酸生成一氧化氮(NO)以增强杀菌与抗肿瘤活性,但过度激活可能导致组织损伤;M2型则依赖IL-4/IL-13等信号激活STAT6-C/EBPβ-KLF4轴,诱导精氨酸酶1(ARG1)将L-精氨酸转化为L-鸟氨酸(图2),促进脯氨酸(胶原合成)与多胺(增殖调控)生成,支持组织修复及免疫耐受。尽管M1-M2二分法在小鼠模型中广泛使用,但人类巨噬细胞呈现更复杂的连续极化状态(如单细胞测序揭示LPS刺激可同时诱导NOS2和ARG1),且代谢途径的时空动态显著:静息时因缺乏高亲和力转运蛋白(如SLC7A1)而低效利用L-精氨酸,激活后则通过上调转运蛋白(SLC7A2)及酶协同表达增强摄取;在伤口愈合中,早期NO爆发清除病原体后,ARG1主导的L-鸟氨酸代谢驱动胶原沉积完成修复,而肿瘤相关巨噬细胞(TAMs)通过ARG1耗竭L-精氨酸并形成物理屏障,双重抑制CD8+T细胞功能。此外,线粒体ARG2、代谢产物(肌酸、胍丁胺)及多胺网络进一步扩展了调控维度:肌酸通过染色质重塑增强IL-4-STAT6依赖的ARG1表达,胍丁胺抑制M1极化,多胺则通过羟基化eIF5A重编程线粒体代谢(如TCA循环)维持M2表型。物种差异(如人类中性粒细胞为ARG1主要来源)及代谢竞争争议(L-精氨酸充足时NOS与ARGs竞争效应微弱)提示转化研究的复杂性,而靶向ARG1(如抑制TAMs免疫抑制)或联合干预多胺代谢(阻断合成与摄取)已在癌症、纤维化及自身免疫病模型中展现治疗潜力。综上,L-精氨酸代谢通过酶活性、转运蛋白、表观修饰及代谢产物的多层次交互,赋予巨噬细胞在炎症与修复中动态平衡的可塑性,成为连接免疫代谢与疾病干预的核心枢纽。
中性粒细胞在骨髓分化早期阶段短暂转录精氨酸酶1(ARG1),随后将酶蛋白储存在三级颗粒中,进入循环后ARG1 mRNA消失,但在肿瘤微环境(如非小细胞肺癌)或髓系抑制细胞(PMN-MDSCs)中可重新启动ARG1转录以增强免疫抑制功能。中性粒细胞表现出精氨酸酶亚型的选择性调控:ARG1作为主要同工酶,其释放依赖颗粒胞吐作用,在生理pH下需与初级颗粒成分(如组织蛋白酶S)共同释放以激活酶活性——例如,中性粒细胞胞外陷阱(NETs)形成期间,组织蛋白酶S切割ARG1增强其胞外L-精氨酸耗竭能力,进而诱导癌细胞凋亡;而ARG2在头颈部癌等模型中虽与脂代谢重编程(脂肪酸/脂蛋白代谢上调)及免疫抑制相关,但其功能尚未完全明确。内质网(ER)应激是驱动中性粒细胞免疫抑制的关键机制:在肺癌、胰腺癌等模型中,ER应激相关基因(CHOP、XBP1、ATF4)上调触发清道夫受体LOX1表达,促进脂质代谢异常并协同ARG1高表达,形成抑制性微环境。这种代谢-应激轴的双向调控(如ARG1释放诱导癌细胞ER应激凋亡,而肿瘤微环境应激反促中性粒细胞ARG1激活)揭示了中性粒细胞在癌症进展中的动态平衡角色,其精氨酸酶活性的时空特异性调控成为连接免疫抑制与代谢重塑的关键节点。
在肿瘤微环境中,T细胞的代谢适应对于有效的抗肿瘤反应至关重要。在肿瘤微环境中,肿瘤中的各种成分(如中性粒细胞和巨噬细胞)释放的细胞外精氨酸酶1(ARG1)会降解L-精氨酸,使T细胞缺乏一种必需氨基酸,从而干扰T细胞的存活和效应功能。与髓系细胞不同,在髓系细胞中ARG1是L-精氨酸水解的主要酶,而在T细胞中,ARG2被确定为负责L-精氨酸代谢的异构体,它支持CD4+T细胞的活化、存活以及获得效应记忆表型。体外蛋白质组学和基因缺失研究表明,L-精氨酸-ARG2轴通过改变转录调节因子(如BAZ1B、PSIP1和转录因子)的活性来调节糖酵解和线粒体呼吸以及T细胞的存活。然而,L-精氨酸如何改变这些调节因子的功能以及如何在体内导致T细胞存活增加仍不清楚。
尽管在T细胞中ARG2是主要的同工型,但近期证据表明,在流感病毒感染期间,肺部CD4+T细胞会上调ARG1。在小鼠CD4+T细胞中敲除Arg1可加速病毒特异性TH1细胞介导的效应反应,从而实现高效的病毒清除。由ARG1生成的L-鸟氨酸确保了谷氨酰胺向三羧酸循环的最优通量。在没有ARG1的情况下,谷氨酰胺则被用于生成鸟氨酸和多胺。这种谷氨酰胺分流会降低三羧酸循环的活性,从而在维持有效病毒清除的同时减少TH1细胞造成的组织损伤。有趣的是,ARG1在CD4+T细胞中的功能不能由ARG2补偿,这表明它们并非功能冗余。关于ARG2的表达,小鼠Arg2缺陷型T细胞具有更高的细胞内L-精氨酸水平。值得注意的是,精氨酸酶2缺陷型T细胞在体内具有更强的抗肿瘤活性。这表明在活化的T细胞中精氨酸酶2的经典诱导作用是一种负反馈机制,可抑制T细胞的效应功能。因此,高水平的L-精氨酸通过维持记忆表型有利于T细胞的存活和抗肿瘤效应功能。从机制上讲,L-精氨酸通过BAZ1B、转录因子translin和PSIP1的协同作用抑制细胞葡萄糖摄取,并转向线粒体氧化代谢,从而促使T细胞获得记忆表型。
4.精氨酸类似物和L-精氨酸在疾病中的作用
精氨酸酶(ARG)活性的变化会改变L-精氨酸的生物利用度,进而导致下游代谢产物(如多胺和脯氨酸)合成失衡。由此引发的蛋白质合成失调会影响多种生物学反应,包括但不限于癌症、自身免疫性疾病和感染性疾病期间免疫细胞的纤维化、细胞增殖和代谢适应。L-精氨酸的生物利用度不仅取决于精氨酸酶的活性,还受到L-精氨酸转运蛋白缺乏或缺乏L-精氨酸特异性tRNA的影响。
精氨酸酶(ARG)的表达在多种肿瘤类型中均上调,导致L-精氨酸分解代谢增加。这会通过造成L-精氨酸(T细胞增殖所必需)的缺乏而形成免疫抑制环境,并促进多胺、脯氨酸和胶原蛋白的合成,从而促进肿瘤生长。例如,肿瘤抑制蛋白p53的突变已被证明会以细胞自主的方式增加精氨酸酶1(ARG1)水平和肿瘤生长所需的多胺合成。在各种癌症中,精氨酸酶水平随肿瘤分级和分期的增加而升高,这与更差的预后相关。精氨酸酶1主要由髓样细胞产生,但也可能存在于癌细胞中,而精氨酸酶2则存在于癌细胞和癌相关成纤维细胞中。与无肿瘤个体相比,癌症患者的外周血中髓样抑制细胞(MDSCs)更为丰富,精氨酸酶1水平在血浆中升高,并且随着肿瘤分期的进展而进一步升高。这在一定程度上可能是由于白细胞介素8(IL-8)水平升高,诱导中性粒细胞释放精氨酸酶1。癌细胞还能释放含精氨酸酶1(ARG1)的细胞外囊泡,这些囊泡可以从血浆中分离出来。这些囊泡被运输到引流的淋巴结,在那里被树突状细胞(DCs)摄取,并抑制抗肿瘤T细胞反应。
多项研究已将肿瘤中表达ARG1的髓源性抑制细胞(MDSCs)的存在或ARG表达总体情况与肿瘤中T细胞浸润减少以及不良预后相关联。另有研究提供了ARG1表达与肿瘤免疫抑制之间存在因果关系的证据。例如,在胰腺癌的原位小鼠模型中,巨噬细胞(TAMs)中Arg1的基因缺失增加了CD8+T细胞浸润并延缓了侵袭性疾病的发生。在肥胖驱动的胰腺导管腺癌(PDAC)原位移植模型中,癌细胞中Arg2的基因缺失抑制了肿瘤的发生。此外,如后文所述,ARG抑制剂或补充L-精氨酸可在不同肿瘤模型中恢复T细胞功能。
自身免疫性疾病的治疗通常采用免疫调节疗法,旨在减轻炎症。鉴于L-精氨酸水平升高会增强T细胞活性,降低L-精氨酸的可用性可能是治疗T细胞介导的自身免疫性疾病的一种潜在策略。例如,银屑病是一种主要由T细胞驱动的自身免疫性皮肤病。在诱导的银屑病样皮炎小鼠模型中,给予精氨酸酶1(ARG1)可显著降低皮肤棘层肥厚和炎症标志物水平144,这表明L-精氨酸耗竭对银屑病具有治疗潜力。脊髓损伤后,T细胞可浸润中枢神经系统并引发类似自身免疫的神经炎症。在脊髓损伤引发神经炎症的小鼠模型中,全身给予重组精氨酸酶1可减少脊髓区域的T细胞浸润,并改善运动功能恢复。类风湿性关节炎是一种慢性自身免疫性疾病,其特征是滑膜关节破坏,涉及B细胞、T细胞以及破骨细胞。类风湿关节炎患者的滑液中L-精氨酸水平升高,并且与促炎细胞因子IL-1β、IL-6和IL-8水平升高呈正相关。在胶原诱导性关节炎的小鼠模型中,采用不含L-精氨酸的饮食或使用D-精氨酸阻断细胞对L-精氨酸的摄取,均能抑制关节炎的进展。此外,向这些小鼠施用重组精氨酸酶1(ARG1)可减轻症状,这可能是通过抑制破骨细胞形成以及可能减弱T细胞反应来实现的。这些例子表明,L-精氨酸的耗竭能够降低T细胞活性和自身免疫症状。
然而,尽管ARG1通常被认为是免疫反应的负调节因子,但在某些情况下,它却可能反常地促进自身免疫性疾病的发生。例如,在实验性自身免疫性脑脊髓炎(EAE)中,脊髓内ARG1的表达显著上调,这会促进疾病的发展。通过全身性给予氨基-6-硼己酸(ABH)抑制ARG1,可使疾病发病延迟且病情减轻。对此的一种可能解释是,当ARG1被抑制时,L-精氨酸的积累会作为底物产生一氧化氮(NO),进而抑制促进EAE发生的TH17细胞的分化。从机制上讲,NO通过一种称为硝化的过程与转录因子维甲酸相关孤儿受体γt(RORγt)上的酪氨酸残基共价结合,从而抑制Il17启动子的激活。另外,NO还可以通过降低芳烃受体的表达来抑制TH17细胞的分化,而芳烃受体是TH17细胞形成的正调节因子。抑制精氨酸酶1(ARG1)还能改善系统性红斑狼疮(SLE)临床前模型的疾病症状,SLE是一种慢性自身免疫性疾病,会影响身体的多个部位。患有SLE的个体中,髓源性抑制细胞(MDSCs)的频率增加,这可能促进了疾病的发展。研究发现,来自SLE患者的MDSCs能够以ARG1依赖的方式促进T细胞分化,并在小鼠模型中加剧疾病进展。这些发现表明,精氨酸和精氨酸酶在自身免疫性疾病中的作用取决于具体情境,在T细胞介导的自身免疫性疾病中,精氨酸耗竭策略可能并不适用。
ARG1在感染性疾病中呈现双重角色:一方面通过消耗L-精氨酸诱导免疫抑制,另一方面被病原体劫持以促进自身生存。在脓毒症中,免疫细胞过度激活导致L-精氨酸耗竭(低精氨酸血症),循环中ARG1+低密度中性粒细胞抑制T细胞功能,加剧免疫瘫痪;类似机制见于新冠肺炎,血浆ARG1水平与疾病严重程度正相关,中性粒细胞胞外陷阱(NETs)释放的活化ARG1参与肺部免疫血栓形成,而单核细胞ARG1表达驱动免疫抑制微环境。寄生虫感染中ARG1功能呈现组织特异性:曼氏血吸虫虫卵诱导肝脏巨噬细胞ARG1高表达,通过抑制T细胞增殖控制炎症纤维化,但其肺部感染时ARG1缺失不影响TH2反应,提示肝脏微环境通过肝细胞ARG1协同耗竭L-精氨酸;利什曼原虫则直接激活宿主巨噬细胞STAT6信号或独立调控ARG1表达,维持慢性感染。病原体通过多途径劫持精氨酸代谢:幽门螺杆菌通过rocF基因编码自身精氨酸酶,与宿主ARG2协同生成免疫抑制性多胺并诱导巨噬细胞凋亡;分枝杆菌通过IL-10或TLR-MYD88-C/EBPβ轴诱导ARG1,抑制抗菌性一氧化氮生成;布氏锥虫甚至激活宿主ARG1以获取自身增殖所需的多胺。这种“代谢博弈”在结核分枝杆菌与血吸虫共感染中尤为显著,肉芽肿内ARG1高表达加重免疫失衡,凸显ARG1作为感染与免疫交叉调控节点的核心地位。
5.针对精氨酸代谢和精氨酸脱亚氨酶(ARGs)
氨基酸调节或许能成为治疗癌症和传染病的一种新方法。L-精氨酸在癌细胞代谢中起着重要作用,L-精氨酸的缺乏可通过自噬和细胞凋亡相关机制诱导多种类型癌细胞死亡。鉴于精氨酸酶在促进免疫抑制方面的作用,它们是治疗癌症和自身免疫性疾病的良好候选药物。精氨酸酶的酶学以及其多方面作用的理解方面取得的最新进展,使得人们重新对探索干扰机制产生了兴趣。
L-精氨酸的补充策略在免疫调节和疾病治疗中展现潜力,但面临多重挑战:口服补充因首过代谢(人体损失38%,小鼠75%)、胃肠道副作用及低血压风险受限,而L-瓜氨酸可作为替代前体间接提升血浆L-精氨酸水平。在肿瘤治疗中,补充L-精氨酸通过抑制Treg细胞、增强抗肿瘤T细胞反应与检查点抑制剂协同增效,但可能促进肿瘤生长;靶向递送策略(如基因工程CAR-T细胞表达ASS1/OTC酶实现L-精氨酸自循环)或工程菌局部产L-精氨酸可规避风险。临床研究显示,短期补充L-精氨酸可提升NK细胞活性及T细胞增殖,降低感染率(荟萃分析11项试验),头颈癌患者联合营养配方改善生存率,但营养素组合效应难以分离。脓毒症和新冠患者中,补充L-精氨酸降低菌血症死亡率、缩短住院时间并调节炎症,但重症脓毒症患者使用低精氨酸配方可能增加肺炎致死风险,研究异质性(剂量、配方、给药途径)亟需单药试验验证。尽管前景可期,L-精氨酸的“双刃剑”效应(如促肿瘤风险)及精准调控需求(靶向递送、代谢工程)仍需深入探索,以平衡免疫激活与病理进程的复杂关系。
精氨酸剥夺可作为一种潜在的靶向疗法,用于治疗缺乏精氨酸琥珀酸合成酶1(ASS1)或表达诸如KRAS等可使ASS1表达沉默的致癌基因的癌症,使这些癌细胞对精氨酸产生依赖性。包括黑色素瘤、肝细胞癌、前列腺癌和淋巴瘤在内的多种人类肿瘤经常缺乏ASS1和鸟氨酸氨甲酰转移酶(OTC)。肿瘤中ASS1和OTC被沉默的机制尚不完全清楚。先前在淋巴瘤细胞系中的研究报道了ASS1的甲基化依赖性转录沉默,而黑色素瘤细胞则通过缺氧诱导因子1α(HIF1α)依赖性机制抑制ASS1启动子。
经过改良的精氨酸降解酶,如聚乙二醇化重组人精氨酸酶1(rhArg1-PEG或BCT-100)和聚乙二醇化精氨酸脱亚胺酶(ADI-PEG20),已在癌症临床试验中被开发出来,并显示出安全有效,无论是作为单一疗法还是与化疗和放疗联合使用。
通过使用精氨酸脱羧酶也可以实现精氨酸剥夺,这种酶能将L-精氨酸分解为二氧化碳和L-胍丁胺。L-胍丁胺能抑制肿瘤细胞增殖并降低细胞内多胺含量。此外,L-胍丁胺诱导的细胞增殖抑制可促进细胞凋亡。然而,尽管精氨酸脱羧酶在体外能够抑制癌症生长并诱导肿瘤细胞死亡,但该酶的临床开发却面临着与疗效、安全性和成本相关的挑战。
靶向精氨酸酶(ARGs)活性的策略涵盖小分子抑制剂、间接调控及免疫疗法等多维度探索:传统化学抑制剂如NOHA、nor-NOHA通过模拟底物结构竞争性抑制ARG活性,但受限于亚型选择性差(偏向ARG2)、肝毒性及低生物利用度;硼酸衍生物ABH、BEC因急性毒性未进一步开发。新一代抑制剂如CB-1158(靶向胞外ARG1)和OATD-02(双靶ARG1/ARG2)通过结构优化提升选择性与口服活性,已在多种实体瘤模型中与免疫检查点抑制剂联用展现协同抗肿瘤效果,并进入晚期癌症临床试验。间接调控策略如PDE5抑制剂(西地那非等)通过升高cGMP水平抑制ARG1/NOS2转录,削弱MDSCs介导的免疫抑制。鉴于ARG1(免疫抑制)与ARG2(肿瘤微环境代谢)的病理功能差异,开发亚型特异性抑制剂及单抗(靶向胞外ARG1减少系统性毒性)成为趋势,而ARG1/ARG2疫苗通过激活特异性T细胞在肺癌等模型中初步显示抑瘤潜力。然而,系统性抑制ARG可能引发尿素循环紊乱(高氨血症)及肾功能损伤,需结合肝功监测与细胞特异性递送技术优化安全性。当前挑战包括完善ARG亚型时空表达图谱、平衡免疫激活与代谢稳态,以及推动疫苗与单抗的临床转化验证。
-
2026-09-05
-
2026-09-02
-
2026-09-02
-
2026-09-02
-
2026-09-02
-
2026-09-01
-
2026-09-01
-
2026-09-01
- ▪ 四氧化三铁磁性纳米微球(氨基修饰):MRI/磁热疗/磁分离三合一平台
- ▪ 纳米二氧化钛(锐钛矿相):光催化/抗菌/紫外屏蔽多功能平台
- ▪ 骨关节炎纳米治疗:压电免疫调控与软骨修复材料前沿
- ▪ 压电水凝胶定制服务:力-电耦合生物活性支架
- ▪ 氧化锌纳米颗粒:紫外屏蔽·压电·光催化多功能平台
- ▪ 钛酸钡纳米颗粒(四方相·压电相):介电/压电性能与生物医学应用
- ▪ TACE载药栓塞微球:六大材质体系(PVA/海藻酸钠/GelMA/CaCO3/PLGA/明胶)对比与定制选型
- ▪ 空LNP也是强佐剂!《Immunity》:脂质纳米颗粒把蛋白疫苗喂进生发中心【图解】
- ▪ 空LNP也是强佐剂!《Immunity》:脂质纳米颗粒把蛋白疫苗喂进生发中心【详读】
- ▪ 《NSR》Highlight:给脂质侧链多挂几颗羟基——武汉大学殷昊团队HTO12,碱基编辑LNP的脂质用量直降2.5倍【图解】
- ▪ 《NSR》Highlight:给脂质侧链多挂几颗羟基——武汉大学殷昊团队HTO12,碱基编辑LNP的脂质用量直降2.5倍【详读】
- ▪ 《Journal of Controlled Release》:RVG肽修饰LNP双药同载,四条通路一起堵,髓母细胞瘤原位小鼠生物发光降8倍【图解】
- ▪ 《Journal of Controlled Release》:RVG肽修饰LNP双药同载,四条通路一起堵,髓母细胞瘤原位小鼠生物发光降8倍【详读】
- ▪ 《JCIS》:宾大把PEG刷进支撑脂双层:氮密度从5 nm压到1 nm,IgG涂层的软硬竟由锚点间距说了算【图解】
- ▪ 《JCIS》:宾大把PEG刷进支撑脂双层:氮密度从5 nm压到1 nm,IgG涂层的软硬竟由锚点间距说了算【详读】