
Nature 综述:炎症性疾病的新型治疗靶点:炎症小体相关蛋白


炎症小体 (inflammasomes) 是能够诱导病理性炎症和组织损伤的信号转导平台,具有成为一类令人兴奋的新型药物靶点的潜力。目前处于临床试验阶段的NLRP3炎症小体小分子抑制剂已证明炎症小体具有“可成药性”,因此药物研发项目现在正聚焦于其他关键的炎症小体分子。本篇综述由Rebecca C. Coll和Kate Schroder发表在《Nature Reviews Immunology》,作者阐述了炎症小体组分作为候选药物靶点的潜力以及正在开发的新型炎症小体抑制剂,并讨论了炎症小体的信号生物学如何为治疗性靶向提供机制见解。同时讨论了在临床前开发和临床试验中靶向这些分子所面临的主要科学和技术挑战。
先天免疫系统是抵御体内稳态潜在威胁的第一道防线。哨兵样先天免疫细胞,如巨噬细胞和中性粒细胞,通过特化受体持续监测环境中的细胞应激、细胞损伤和感染信号。这些受体包括扫描细胞外环境和内体(如 Toll 样受体 TLRs)的膜结合受体,以及监视细胞内部(如核苷酸结合域 NBD 和富含亮氨酸重复序列LRR受体NLRs)的胞质受体。一组特定的胞质受体感知对机体稳态的潜在威胁,并通过组装称为炎症小体的信号复合物来响应,炎症小体诱导细胞释放促炎细胞因子 IL-1β和 IL-18以及多种警报素(alarmins),并驱动一种由消皮素 D (gasdermin D, GSDMD) 引发的炎症性细胞死亡形式,称为细胞焦亡 (pyroptosis) 。
生物性 IL-1β 拮抗剂(anakinra、ribonacept 和canakinumab)已在许多国家临床可用,并且对于治疗许多由炎症小体驱动的疾病(如自身炎症性痛风)非常有效。然而,这些药物通常成本高昂,可能引起注射部位反应,不能穿透中枢神经系统治疗神经系统后遗症,并且可能增加感染风险。此外,IL-1生物制剂不能阻断炎症小体诱导的细胞死亡、警报素释放或 IL-18信号传导,这限制了它们在由这些不依赖于 IL-1 的途径介导病理的炎症性疾病中的疗效。因此,临床上迫切需要能够阻断 IL-1上游或独立于 IL-1的炎症小体通路的药物。
靶向特定炎症小体组分的小分子具有能够抑制所有炎症小体依赖性输出物的优势,包括 IL-1β、IL-18和细胞焦亡。抗体和其他生物制剂对中枢神经系统的渗透性差,而小分子可以通过优化设计穿过血脑屏障。纳米抗体 (Nanobodies)也有可能被设计成高效穿过血脑屏障,用于治疗神经系统疾病。重要的是,小分子生产成本更低,且比生物制剂更易于给药,它们已成为靶向炎症小体治疗方法的主要焦点。
过去十年,炎症小体抑制剂的研发取得了巨大进展,这始于2015年首次报道的一种有效且特异的含 NBD、LRR 和 PYD 结构域的蛋白 3 (NLRP3)炎症小体抑制剂,它提供了重要的原理证明,即炎症小体是可成药靶点。此后,大量的学术和工业活动催生了众多报道新型炎症小体抑制剂的出版物和专利,生物技术和制药公司也启动了多个商业化项目。目前已有几种特异性 NLRP3 抑制剂处于人体临床试验阶段(表1),药物设计工作现在正集中于靶向其他炎症小体蛋白。
九种已充分表征的人类炎症小体——经典炎症小体 NLRP3、NLRP6、NAIP–NLRC4、NLRP1、CARD8、AIM2和pyrin,以及非经典炎症小体CASP4和CASP5(图1)——均与人类疾病存在因果关联。编码炎症小体成核蛋白(例如 NLRP3、NLRC4 和 PYRIN)的某些基因突变会导致罕见但严重的单基因自身炎症性疾病,包括遗传性发热综合征和巨噬细胞活化综合征(MAS)。炎症小体也驱动一系列获得性疾病,包括代谢性疾病(如痛风)、关节炎、呼吸系统疾病(如石棉肺、矽肺和哮喘)、炎症性皮肤病、神经退行性疾病(如阿尔茨海默病和帕金森病)以及严重感染期间的病理性炎症(例如病毒诱导的急性呼吸窘迫综合征和脓毒症诱导的多器官衰竭)。对于单一类型炎症小体是主要且非冗余的病理驱动因素的情况,特异性靶向该炎症小体的抑制剂在临床上具有吸引力,可以沉默病理性炎症反应,同时保留其他炎症小体介导的反应(如抗菌防御)。对于其他情况,通过靶向共享组分(例如 ASC或CASP1)或共享的促炎介质(如 IL-1β、IL-18 或 GSDMD)来阻断多个炎症小体可能更合适(图3)。
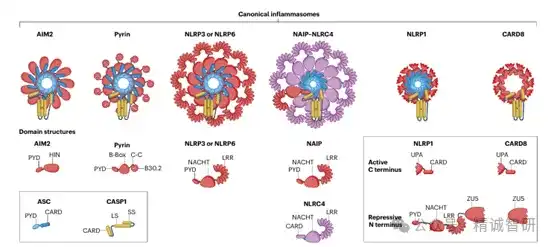
图1.人类典型炎症小体激活胱天蛋白酶1
NLRP3炎症小体驱动多种疾病,包括遗传性自身炎症性疾病、哮喘、溃疡性结肠炎、关节炎和神经退行性疾病。NLRP3 主要在髓系细胞中表达,由氨基末端 PYD、具有 AAA ATPase 酶功能的中央神经元凋亡抑制蛋白 (NAIP)、CIITA、HET-E 和 TPI (NACHT) 结构域以及羧基末端 LRRs组成 (图 1和图2)。髓系细胞表达所有三种关键的 CASP1 底物(pro-IL-1β、pro-IL-18 和 GSDMD),这些蛋白的切割诱导激活驱动了炎症和细胞焦亡。
NLRP3炎症小体是第一个被小分子抑制剂特异性靶向的炎症小体类型,即工具化合物 MCC950(也称为 CP-456,773 或 CRID3)。随后报道了其他几种 NLRP3 抑制工具化合物,如 CY-09和冬凌草甲素 (oridonin),其中 MCC950 仍然是这些化合物中效力最强且在实验研究中使用最广泛的。NLRP3抑制剂在100多个临床前炎症性疾病模型中显示出疗效,并且目前有几种 NLRP3 抑制剂正在进行临床试验(表1)。
NLRP3抑制剂具有多种作用机制,这为了解如何靶向其他炎症小体分子提供了见解。
表1. NLRP3特异性小分子抑制剂在人体临床试验中的应用
在所有炎症小体传感器蛋白中,NLRP6 可能是最不适合抑制的靶点,因为 NLRP6 似乎执行多种维持机体稳态的功能。因此,抑制 NLRP6 功能可能伴随靶点安全风险。NLRP6 主要在肠道表达,对于维持肠道稳态和预防胃癌至关重要。
与 NLRP3 类似,NLRP6 组装一个含 ASC和CASP1 的炎症小体(图 1),但其独特之处在于需要液-液相分离 (liquid-liquid phase separation) 来触发NLRP6聚集,从而启动炎症小体组装和信号传导。
NAIP–NLRC4 炎症小体
NAIP–NLRC4 炎症小体在髓系细胞和肠上皮细胞中提供抗菌防御。人类NAIP(及其小鼠同源物)通过识别毒力因子(如细菌鞭毛蛋白,以及噬菌体3型和4型分泌系统的杆和针蛋白)来感知致病性革兰氏阴性菌种(如沙门氏菌和军团菌)。
NLRC4 的功能获得性突变 (gain-of-function mutations) 导致以自发或应激诱导的 NLRC4 炎症小体信号为特征的自身炎症性疾病:伴有婴儿期小肠结肠炎的自身炎症、新生儿起病的多系统炎症性疾病和家族性冷诱导自身炎症综合征。这些患者的某些症状可以通过已批准的抗 IL-1 生物制剂缓解,但其他症状在抗 IL-1治疗后并未缓解,这表明 IL-18 和细胞焦亡对病理学有关键贡献。抗IL-18药物,如重组 IL-18结合蛋白(IL-18BP),正在试验中但尚未获准临床使用。目前尚未报道特异性的 NLRC4 抑制剂;然而,小分子 C77 同时靶向 NLRP3 和 NLRC4,并证明了 NLRC4 具有可成药性的概念验证。开发特异性、强效的 NLRC4 抑制药物将改变 NLRC4 驱动的自身炎症性疾病的临床管理——此类药物不仅能抑制 IL-1β 和 IL-18 的病理效应,还能阻断炎症小体介导的上皮细胞死亡,从而恢复屏障防御,这是小肠结肠炎治疗的一个关键目标。
主要在表皮表达的 NLRP1 炎症小体,正在成为皮肤和气道表皮等屏障表面炎症和免疫病理学的关键驱动因素。NLRP1 识别病毒分子和紫外线,并通过组装 NLRP1 炎症小体复合物激活 CASP1 (图 1) 来响应,驱动成熟 IL-1β 和 IL-18 的释放并诱导细胞焦亡。
尽管是第一个被发现的炎症小体,NLRP1 的功能直到最近才被阐明。开创性研究已表明,几种病毒通过上皮 NLRP1 炎症小体损伤肺上皮并诱导炎症。人类 NLRP1 的功能获得性突变导致青少年期复发性呼吸道乳头状瘤病,使个体易患肺鳞状细胞癌。与此一致的是,在临床试验数据的二次分析中,抗 IL-1β生物制剂canakinumab对预防肺癌发展具有保护作用,尽管随后在肺癌中使用卡那单抗的试验未获成功。
NLRP1炎症小体也诱导皮肤炎症,导致免疫病理学、增生和疾病。例如,紫外线诱导的 NLRP1信号传导是晒伤中炎症反应的基础。皮肤中不受控制的 NLRP1信号传导导致白癜风和银屑病的炎症性皮肤病变,并促进细胞因子诱导的表皮角质形成细胞过度增殖,使患者易患鳞状细胞癌。
图2.人炎症小体激活不同的胱天蛋白酶以切割和激活GSDMD、IL-1 β和IL-18
与 NLRP1 类似,CARD8 被病毒蛋白酶(例如来自 HIV、SARS-CoV-2、人鼻病毒和柯萨奇病毒 B3 的蛋白酶)切割和激活,这诱导了 CARD8 的 C 末端与 CASP1 之间的直接相互作用,导致 CASP1 二聚化和激活 (图1&2)。CARD8 炎症小体的主要功能似乎是触发细胞焦亡。
作为最近被识别的炎症小体传感器分子,CARD8的功能仍在不断被发现。关于CARD8炎症小体功能的第一份报告来自对 HIV 感染的研究。几十年来,HIV 诱导 CD4+ T细胞丢失的分子机制未知。最近的文章报道,HIV 蛋白酶在CD4+ T细胞中切割并激活 CARD8炎症小体,导致CARD8导向的细胞死亡。因此,CARD8化学激活剂,如DPP9抑制剂,有潜力增强非核苷类逆转录酶抑制剂在消除 HIV 感染者病毒储存库中的有效性。
图3.靶向炎症小体途径的策略
AIM2是一种非NLR的先天免疫传感器,感知胞质双链DNA (dsDNA)。AIM2 在髓系和淋巴系细胞中基础表达,并在多种细胞类型中被干扰素信号强烈诱导。AIM2 与特定癌症和自身免疫性疾病的发病机制有关,并且最近被证明在动脉粥样硬化、中风和烧伤后的病理性炎症中起作用。
尽管 AIM2 的结构和激活在生物化学上已得到很好的表征,但描述的 AIM2 直接抑制剂很少。最近,4-磺基杯芳烃 (4-sulfonic calixarenes) 被描述为可阻断 dsDNA 与 AIM2 的 HIN200 结构域结合并在体内抑制 AIM2。进一步的工作发现这些化合物与临床批准的药物苏拉明(suramin) 在结构上相似,后者也能抑制AIM2。
Pyrin(由MEFV基因编码)主要在髓系细胞中表达,在结构上不同于其他炎症小体成核蛋白。Pyrin不直接识别微生物配体,而是由 Rho GTPase活性的变化激活。14-3-3 蛋白对 pyrin 的负向调节是一个关键的控制点,因为破坏 14-3-3 结合的 pyrin 罕见突变会导致一种称为伴中性粒细胞性皮病的 pyrin 相关性自身炎症的自身炎症性疾病。
聚集在B30.2结构域的 Pyri 突变导致遗传性自身炎症性疾病家族性地中海热 (FMF),表明 B30.2 结构域也参与调节 pyrin 激活。FMF 是最常见的单基因自身炎症性疾病,其特征是反复发热和多浆膜炎。FMF的一线治疗是秋水仙碱,这是一种不可逆地结合微管并破坏其聚合的古老药物。秋水仙碱在 FMF 中的作用机制被认为涉及增加 Rho活性或破坏微管。
对于秋水仙碱耐药的FMF或更严重的pyrin相关自身炎症性疾病,抗 IL-1生物制剂是非常有效的疗法。阿那白滞素(重组 IL-1 受体拮抗剂)和卡那单抗(抗 IL-1β)被批准用于治疗 FMF。进一步研究B30.2结构域和磷酸酶调节pyrin活性的分子机制可能为新的治疗方法提供机会。
CASP4 和 CASP5 炎症小体
人类CASP4和CASP5炎症小体提供针对已侵入细胞胞质的革兰氏阴性菌的宿主防御。CASP4 和CASP5是细菌脂多糖(LPS)的传感器,触发这些半胱天冬酶的激活。LPS激活的CASP4、CASP5和CASP11切割 GSDMD以诱导细胞焦亡,这导致胞质细菌从细胞中排出,并使它们对细胞外防御机制(如中性粒细胞介导的杀伤)敏感。在被革兰氏阴性菌入侵的中性粒细胞中,小鼠 CASP11 和人类 CASP4 触发一种特殊形式的细胞焦亡,称为 NETosis,其中中性粒细胞以其染色质形式挤出中性粒细胞胞外陷阱 (NETs) 来捕获细菌并阻止其传播。
对脓毒症小鼠模型的研究强调了CASP11 炎症小体在驱动细胞因子风暴和脓毒症致死性中的关键作用。在临床上,脓毒性休克仍然难以治疗,死亡率很高。因此,抑制 CASP4和/或CASP5 驱动的多器官炎症反应的方法,与抗生素联合使用,可能对革兰氏阴性菌诱导的脓毒性休克患者有益。
新出现的文献也表明 CASP4 可能在神经退行性疾病中促进病理。CASP4被证明与阿尔茨海默病风险相关基因共表达,并且在阿尔茨海默病小鼠模型中转基因表达人类 CASP4促进了神经炎症并恶化了认知障碍。机制目前尚不清楚,但可能涉及CASP4被淀粉样蛋白-β 斑块或内质网应激途径激活。
许多复杂疾病是由多个炎症小体的联合作用引起的。例如,NLRP3 和 AIM2 炎症小体都参与非酒精性脂肪性肝炎的病理过程,而NLRP3、NLRP1、NLRC4 和 CARD8炎症小体共同介导炎症性肠病中的病理性免疫活性。因此,需要采用抑制多个或所有炎症小体(多重炎症小体或泛炎症小体抑制剂)的方法来治疗由多个炎症小体亚型联合作用引起的疾病。这种方法存在免疫抑制可能在慢性疾病治疗期间增加感染易感性的风险。炎症小体信号枢纽如 ASC、CASP1 和 GSDMD 有潜力作为多重炎症小体和泛炎症小体抑制的候选靶点 (图 1 和 2)。
常见的炎症小体衔接蛋白ASC是多种类型炎症小体信号传导所必需的,并且还可以将炎症小体信号传播到邻近细胞。所有报道的人类经典炎症小体都需要ASC进行信号传导,但有两个例外:CARD8,它通过CARD-CARD相互作用直接偶联到CASP1;以及NLRC4,对于诱导细胞焦亡 ASC 是可有可无的,但对于诱导细胞因子加工则是部分必需的。在 ASC 依赖性炎症小体信号传导过程中形成的大型 ASC 寡聚体有效地募集并激活 CASP1 作为信号放大的一种手段。
早期在腹膜炎小鼠模型中使用基于抗体的方法靶向细胞外 ASC 的尝试导致了炎症细胞募集增加而非减少,因为抗体调理了细胞外 ASC 斑点并增强了巨噬细胞对其的摄取。这促使开发了一种 ASC 纳米抗体,可结合 ASC 的 CARD 并阻止其与其他蛋白质的相互作用,但缺乏 Fc 结构域以防止被携带 Fc 受体的吞噬细胞摄取。在关节炎小鼠模型中,ASC 纳米抗体显著降低了疾病严重程度和炎症,证明细胞外 ASC 斑点可以被治疗性靶向。另一个小组开发了 IC 100,一种人源化 IgG4k 抗 ASC 单克隆抗体,它在EAE小鼠模型中降低了疾病严重程度。
人类中的炎症性半胱天冬酶 CASP1、CASP4 和 CASP5是泛炎症小体或多重炎症小体抑制剂有吸引力的潜在控制点。
CASP1 是所有经典炎症小体激活的主要半胱天冬酶 (图 2),也可以在 LPS 诱导的CASP4和 CASP5非经典炎症小体下游被激活。CASP1是治疗多重炎症小体驱动疾病中泛炎症小体抑制的一个有吸引力的靶点。
CASP1 有许多底物,但pro-IL-1β、pro-IL-18和 GSDMD是与炎症小体驱动的炎症相关的主要底物。对于主要由单一CASP1底物(例如NLRP3相关自身炎症性疾病中的IL-1β)引起疾病的适应症,阻断该单一炎症介质可能比阻断CASP1的全部活性范围更合适,因为后者中的一些活性可能有益于宿主防御。
炎症小体激活的GSDMD启动细胞焦亡,导致大量非炎症小体底物的细胞内蛋白释放到细胞外环境中。这些蛋白质至少通过两种机制释放:GSDMD孔道促进较小的损伤相关分子模式 (DAMPs) 或警报素(如 IL-1α和 galectin I)的释放,而较大的蛋白质(如HMGB1)则通过孔道形成下游的膜破裂释放。因此,GSDMD是抗炎药物的一个有吸引力的治疗靶点,因为阻断 GSDMD孔道的形成可能阻止CASP1底物IL-1β和IL-18以及其他不被CASP1切割的DAMPs 和警报素的释放。
抑制GSDMD将限制所有炎症小体下游的细胞因子释放和细胞焦亡。值得注意的是,这可能不会完全阻断炎症小体信号传导的效应,因为炎症小体也可以诱导其他较慢的细胞死亡形式,如凋亡和坏死性凋亡。此外,成熟 IL-1β 可以通过一种定义不清的不依赖于 GSDMD 的途径在体外和体内由细胞分泌。
已经描述了几种可以非特异性限制 GSDMD孔道形成或 NINJ1依赖性细胞破裂的分子,如石榴苷、镧系元素 La³⁺ 和 Gd³⁺,以及超生理水平的 Mg²⁺,但它们的临床效用因脱靶效应而受限。人类 GSDMD 活性似乎对Cys191(小鼠中为 Cys192)的修饰高度敏感。坏死磺胺、富马酸二甲酯、异硫氰酸苯乙酯和二硫仑都通过与 GSDMD 的 Cys191 相互作用来阻断细胞焦亡;然而,它们也都修饰其他蛋白质中的半胱氨酸残基,因此不是特异性的 GSDMD 抑制剂。
其他翻译后修饰可能用于 GSDMD 抑制。例如,Thr213 的磷酸化限制了 GSDMD-NT 寡聚化,而志贺氏菌泛素连接酶 IpaH7.8 的泛素化靶向人类 GSDMD 进行蛋白酶体降解。特异性 GSDMD 抑制剂的开发一直具有挑战性,但随着先进结构信息的获得,新的抑制剂无疑正在研发中。
IL-1β 是一种主要由髓系细胞产生的强效炎症细胞因子。IL-1β 激活多种细胞类型并驱动大量基因的表达,包括炎症细胞因子(如 IL-6 和 IL-8)和环氧合酶 2,最终引起系统性反应(如发热)。活性 IL-1β 由所有炎症小体产生,并且 IL-1β 抑制是治疗炎症小体相关自身炎症性疾病的一种成功疗法,证明了 IL-1β 在这些疾病中的关键作用。
IL-1β 通常使用生物制剂进行靶向,这些药物难以进入中枢神经系统,因此对抑制神经炎症无效。目前批准用于治疗自身炎症性疾病、类风湿关节炎、痛风性关节炎和复发性心包炎的三种靶向 IL-1β 信号传导的生物制剂——阿那白滞素(IL-1 受体拮抗剂)、利纳西普(作为 IL-1 陷阱的可溶性诱饵 IL-1 受体)和卡那单抗(中和 IL-1β 的抗体)——并且阿那白滞素被授权用于 COVID-19 患者的紧急使用。IL-1β 驱动的炎症也有助于癌症的疾病进展,并且几种抗 IL-1β 生物制剂被评估用于治疗各种血液系统恶性肿瘤和实体瘤。
Pro-IL-18 在髓系细胞、内皮细胞、上皮细胞和角质形成细胞中组成型表达。IL-18 结合 IL-18 受体 I 型,后者与 IL-18 受体辅助蛋白 (IL-18RAP) 异二聚化,并以类似于 IL-1 受体和 TLRs 的方式启动 MYD88 依赖性信号传导。与 IL-12 联合,IL-18 刺激 T 细胞和自然杀伤细胞分泌干扰素-γ;它还促进细胞毒性和 T 细胞分化,但不引起发热。IL-18 有一个天然的高亲和力拮抗剂,IL-18BP。在健康个体中,大多数 IL-18 处于与 IL-18BP 结合的非活性形式;然而,在巨噬细胞活化综合征 (MAS)、成人斯蒂尔病 (adult-onset Still disease) 和一些自身炎症性疾病(包括与 NLRC4 功能获得性突变相关的疾病)等过度炎症状态下观察到游离 IL-18 水平升高。此外,IL-18 与几种自身免疫性疾病有关,包括炎症性肠病、系统性红斑狼疮和多发性硬化症。
使用几种重组和基于抗体的方法评估了 IL-18 抑制在临床上的应用。重组人 IL-18BP已在成人斯蒂尔病患者中进行了测试,在50%的接受者中减轻了炎症和疾病的临床症状。IL-18BP 疗法也正在试验用于 NLRC4 相关MAS和X连锁凋亡抑制蛋白(XIAP; 凋亡性半胱天冬酶的内源性抑制剂) 缺乏症。GSK1070806 是一种中和IL-18的抗体,在一项旨在改善肾移植后延迟移植物功能的小型试验中进行了测试,结果无效。目前尚无靶向 IL-18 的抗体获得监管批准。
炎症小体抑制剂的安全性担忧
鉴于炎症小体介导针对感染的宿主防御,这引发了担忧,即炎症小体通路抑制剂可能具有增加感染的风险。尽管许多炎症小体通路分子的特异性抑制剂尚待人体测试,但来自目前临床使用的抗 IL-1 生物制剂、NLRP3 抑制剂以及泛半胱天冬酶抑制剂(也称为 IDN6556 或 PF-03491390)的患者数据表明,此类方法通常是安全的。有些令人惊讶的是,接受阿那白滞素(IL-1 受体拮抗剂)治疗的患者感染仅适度增加,并且如果患者确实发生感染,这种生物制剂的体内半衰期短有利于中断治疗以恢复完全的免疫防御。因此,阻断多个炎症小体作用的药物可能相对安全,但明智的做法可能是开发半衰期短的药物,以便在发生感染时能够快速撤药。与泛炎症小体抑制剂相比,单一炎症小体抑制剂的感染风险预期更小,因为炎症小体系统在抗菌反应中存在冗余。事实上,NLRP3 抑制剂在 I 期临床试验中似乎耐受性良好且安全(表 1)。
炎症小体正在成为令人兴奋的药物靶点,推动了学术界、生物技术和“大型制药公司”的药物开发计划。这个充满活力和快速发展的领域为疾病缓解药物提供了新的希望,以治疗以前难以治疗的人类遗传、获得性和感染性疾病。
迄今为止,已经用于癌症患者的其他几种药物开发和递送方法在炎症小体领域的研究有限。ADC,PROTAC和降解特定mRNAs等新型药物形式可能为靶向炎症小体的药物开发带来新的思路和进展。
炎症小体抑制剂领域的发展速度——炎症小体于2002年首次被发现,第一个有效的炎症小体抑制剂于2015年被发现,几种NLRP3抑制剂于2019年进行人体试验——预示着一个令人兴奋的时代即将到来。
R. Coll and K. Schroder, Nature Reviews Immunology, 2025, 25:22-41, Inflammasome components as new therapeutic targets in inflammatory disese
-
2026-09-15
-
2026-09-15
-
2026-09-15
-
2026-09-15
-
2026-09-13
-
2026-09-13
-
2026-09-13
-
2026-09-13
- ▪ AI应用篇:医药场景:AI制药
- ▪ RNA药物天亮了?AOC来了!
- ▪ 从疫苗到体内CAR-T,mRNA药物走到哪一步了?
- ▪ 认识环状RNA药物
- ▪ Vaxfectin,疫苗佐剂的”第二代阳离子先锋” 关于Vaxfectin的理化性质解析
- ▪ DSPE-PEG5000-Maleimide,长链PEG的”深度偶联平台” 关于DSPE-PEG5000-Maleimide的理化性质解析
- ▪ Cholesterol (Water Soluble),水相操作的”胆固醇替身” 关于Cholesterol (Water Soluble) 的理化性质解析
- ▪ DSPE-PEG2000-FITC,纳米颗粒示踪的”荧光灯塔” 关于DSPE-PEG2000-FITC的理化性质解析
- ▪ DOGS (PS),外膜翻转的”分子信号旗” 关于DOGS (PS) 的理化性质解析
- ▪ DLinDMA,siRNA基因沉默的”经典基石” 关于DLinDMA的理化性质解析
- ▪ DSPE-PEG2000-Mannose,巨噬细胞靶向的”导航仪” 关于DSPE-PEG2000-Man的理化性质解析
- ▪ DSPE-PEG2000-NHS,氨基偶联的”万能连接器” 关于DSPE-PEG2000-NHS的理化性质解析
- ▪ DMPE-PEG2000 ammonium,纳米结构脂质载体的”稳定基石” 关于DMPE-PEG2000 ammonium的理化性质解析
- ▪ DSPE-PEG2000-Biotin,生物素-亲和素放大系统的”分子钩子” 关于DSPE-PEG2000-Biotin的理化性质解析
- ▪ DSPE-PEG2000-Maleimide,“点击化学”偶联的分子桥梁 关于DSPE-PEG2000-Maleimide的理化性质解析